-
Электронная почта
yang.chen4@thermofisher.com
-
Телефон
13386161207
-
Адрес
Синьцзиньцзяо
Thermo Fisher Scientific (China) Co., Ltd
Гиперглубокая фосфатная протеомика для селективной оценки ингибиторов протеинкиназы
Дата:2025-08-26Читать:1
Фосфорилирование белков - это универсальная форма посттрансляционной модификации эукариоцитов, которая играет важную роль в передаче клеточных сигналов, клеточных процессах и регулировании белковых функций. Фосфорилирование белка представляет собой перенос концевой фосфатной группы аденозина трифосфата (АТФ) на остатки серина, султана и тирозина основного белка с помощью протеинкиназы. Генетические мутации или аномальная экспрессия протеинкиназы вызывают гиперактивацию киназы, которая вызывает рак и другие заболевания. Таким образом, протеинкиназы стали одной из самых важных мишеней для противоопухолевых препаратов. В настоящее время по всему миру одобрено более 80 ингибиторов киназы (PKI), и около 180 PKI проходят клинические испытания. Тем не менее, исследования и разработки препаратов PKI по - прежнему сталкиваются с рядом проблем, в частности с выбором мишени и токсичностью. В настоящее время селективная оценка PKI в основном основана на сотнях клонированных очищенных белковых киназ или генетически модифицированных высокоэкспрессивных целевых киназ клеточной линии. Очищенные киназы не могут реально отражать селективность PKI в клетках из - за их выхода из клеточной среды; Тесты на генетически модифицированные клетки ограничиваются заранее заданными целевыми киназами. В ответ на эту проблему исследовательская группа Kangjingwu, национальная ключевая лаборатория по регулированию малых молекул в жизненных процессах Шанхайского института органической химии Китайской академии наук, разработала метод сверхглубокой фосфатизированной протеомики и реализовала всестороннюю оценку селективности PKI на клеточном уровне и уровне протеомики.
Фосфорилирование белков характеризуется высокой динамичностью и низкой плотностью (фосфатированный протеин составляет всего 0,1% от общего белка, а тирозин фосфатид составляет всего 0,1 - 1% фосфатированного белка), поэтому концентрация фосфатных пептидных сегментов становится ключевым шагом в масс - спектрометрическом анализе. Для точного измерения фосфатных событий, вызванных PKI, на основе серии разработанных ими микро - цельных аффинных хроматографических колонн (Anal Chem 2020, 923913 - 3922, J Proteome Res 2023, 222450 - 2459, Anal. Chem 2023, 95, 8605 - 8612), была предложена стратегия интеграции трех селективно дополняющих друг друга обогащенных материалов фосфатированных пептидных сегментов, что позволило провести количественный анализ глубины полного покрытия и беспристрастности фосфатированных пептидных сегментов (рис. 1).
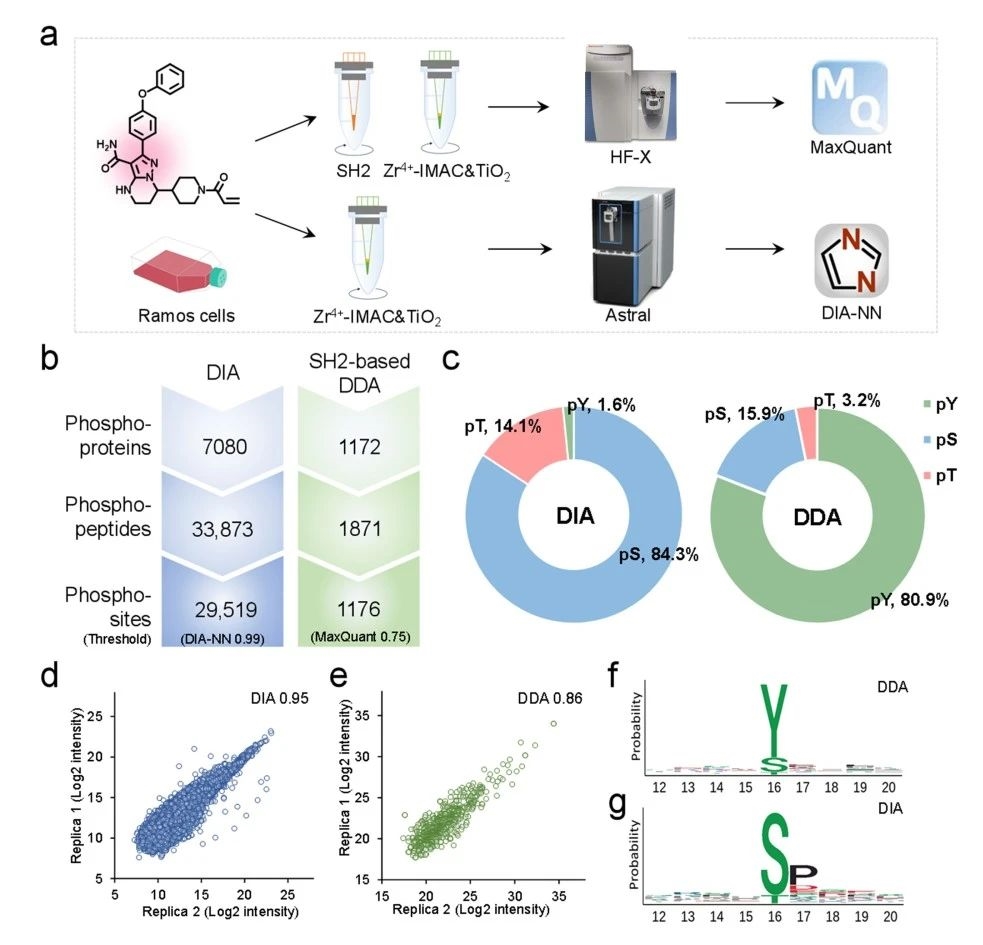
Рисунок 1. Схема процесса сверхглубокого анализа фосфатированных белков и контуры данных анализа фосфатированных белков
В соответствии с моделью Зебутинила уровни фосфатирования в 25 точках фосфатирования, обнаруженных в 25 белках, были значительно повышены, а в 72 точках фосфатирования 66 белков - значительно снижены (из которых фосфатирование тирозином составило 80,9%). В данных независимого масс - спектрометрического сбора данных (DIA) было обнаружено значительное повышение уровня фосфатирования в 91 точке фосфатирования 80 белков и значительное снижение уровня фосфатирования 167 белков (в подавляющем большинстве это точки фосфатирования серина / сульфата) (рис. 2).
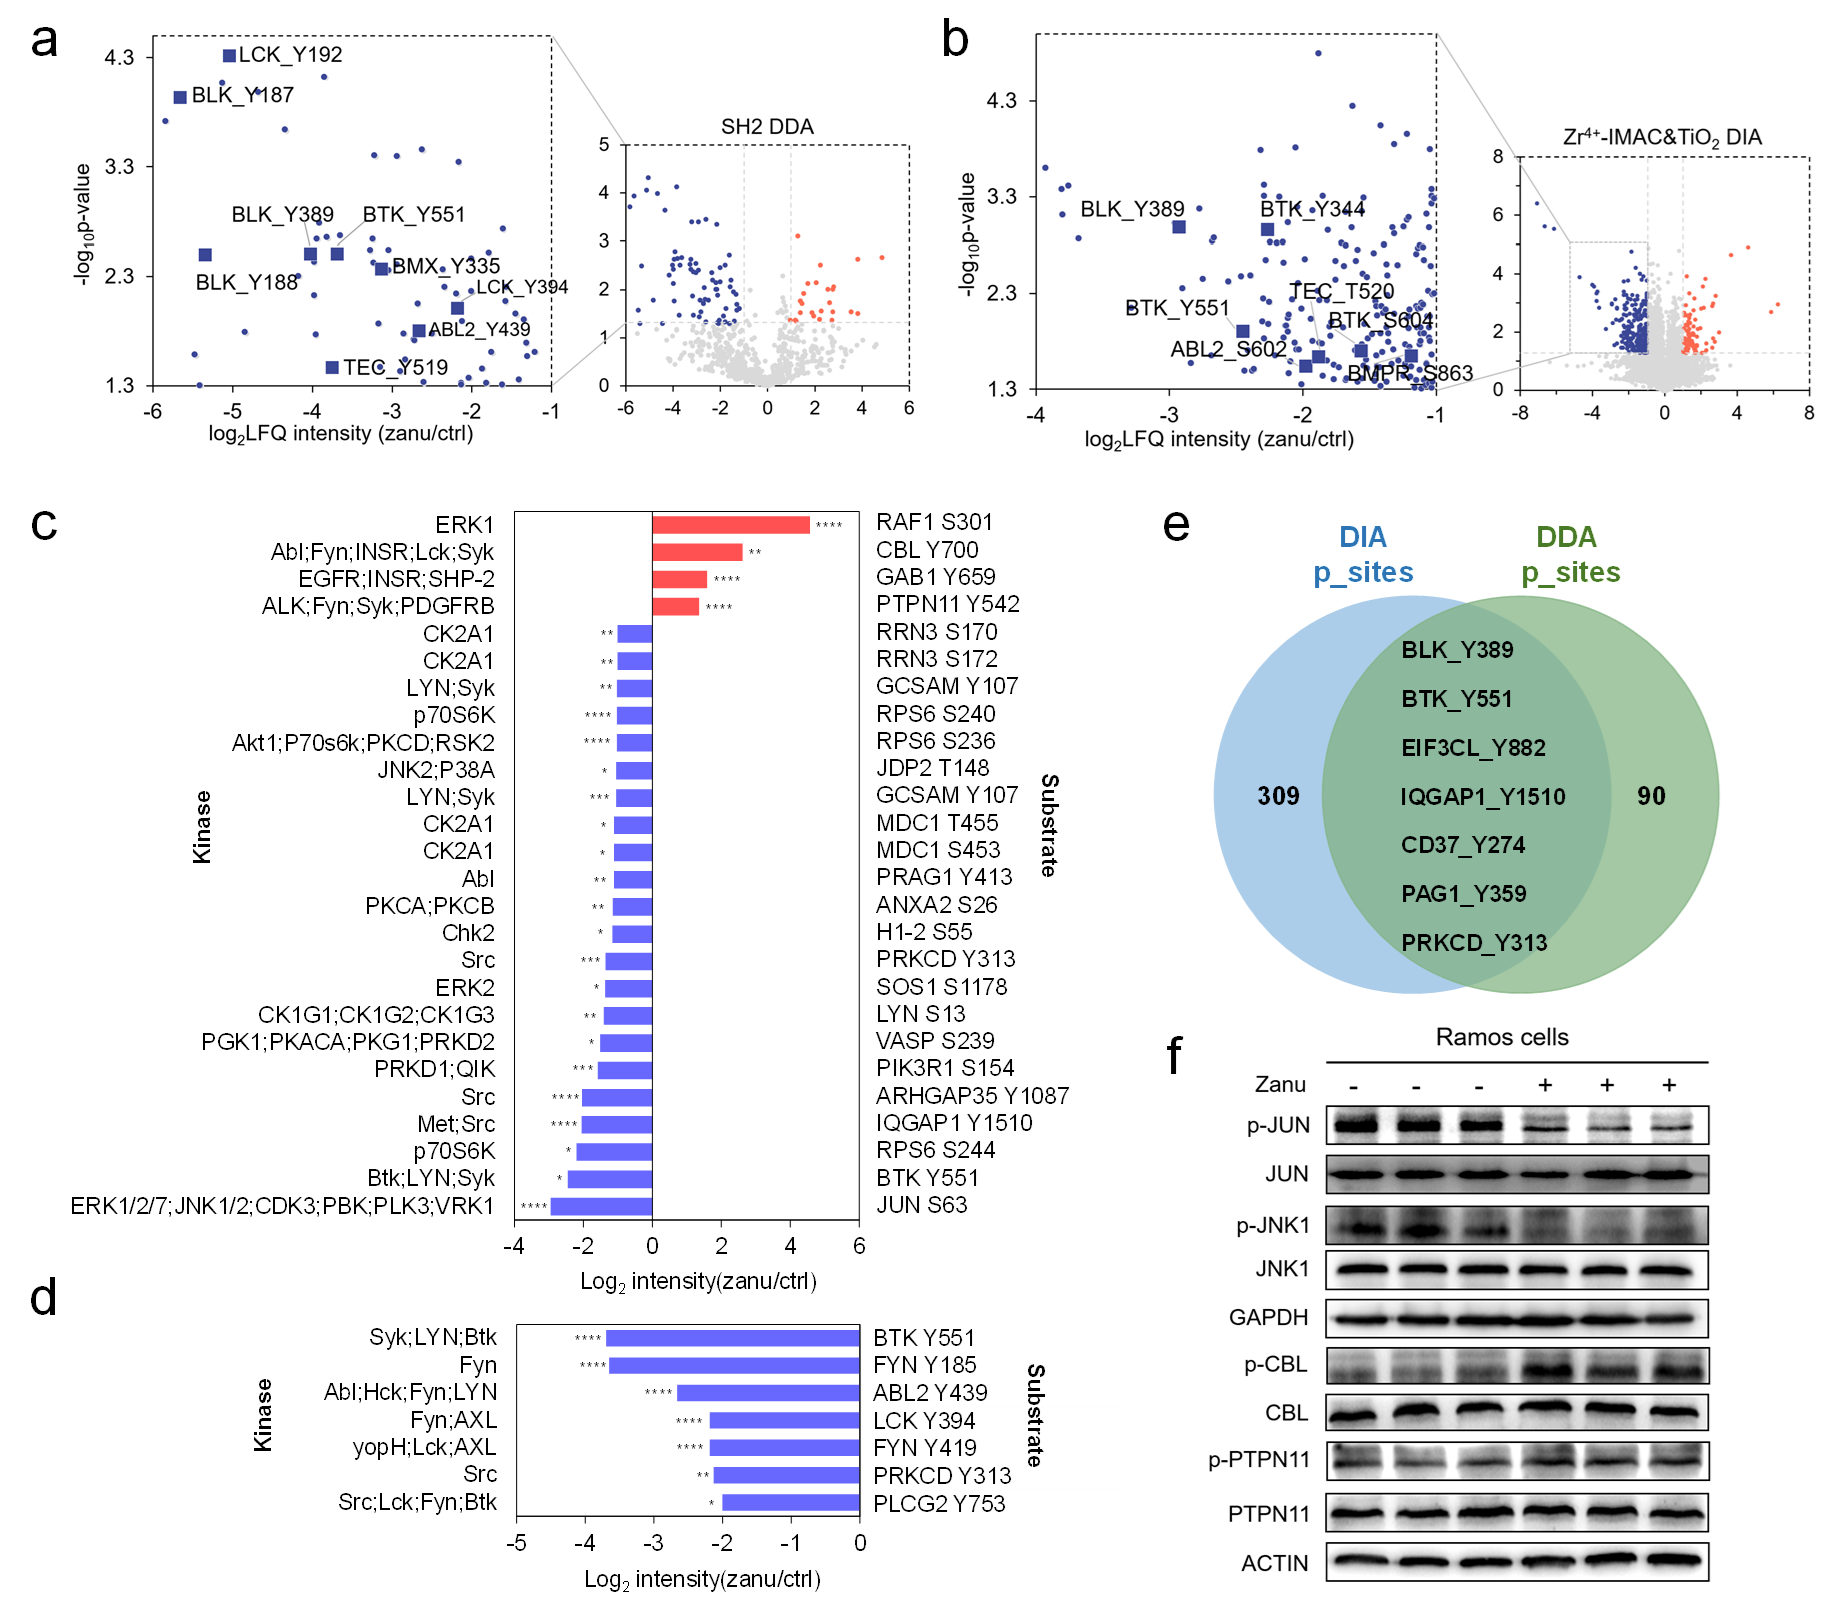
Рисунок 2. Гиперглубокий фосфатный протеомический анализ выявил изменения фосфатирования клеток B - клеточной лимфомы, вызванные зебутинилом (см. большую диаграмму)

Рисунок 3. Протинокиназы, ингибированные или активированные Зебутинилом, и клеточные процессы, в которых он участвует
(Нажмите для просмотра большой карты)
Биоинформатический анализ обогащения показывает, что, помимо подавления сигнальных каналов BCR и FcR, Зебутини регулирует сигнальные пути, такие как B - клеточная апоптоз, EGFR, ERBB, RPTK и каскад MAPK (рисунок 3). Очень интересно, что их исследование показало, что Зебутинил не только подавлял BTK и несколько ключевых сигнальных каналов ниже по течению, но и повышал уровень фосфорилирования белков RAF1, CBL и PTPN11, что, в свою очередь, активировало регулировку отрицательной обратной связи сигнального канала BCR при посредничестве ERK1 / 2 MAPK, блокируя передачу сигнала вверх по течению сигнального пути BCR. По сравнению с мишенями Зебутинила, описанными в литературе, они разработали сверхглубокие фосфатные протеомические стратегии, которые могут получить более богатую информацию о действующих мишенях (или промахах) на уровне живых клеток с высоким потоком. Отображая фосфорилированные события в сигнальном пути клетки, можно панорамно раскрыть механизм действия Зебутинила (рисунок 4).

Рисунок 4. Возможные молекулярные фармакологические механизмы зебутинила, выявленные с помощью ультраглубокой фосфатизированной протеомики
Короче говоря, сверхглубокий фосфатный протеомический анализ не только дает всестороннюю оценку селективности ингибиторов протеинкиназы на клеточном уровне с высоким потоком, высокой чувствительностью и высокой достоверностью, но и раскрывает более тонкий механизм действия PKI, анализируя каскадные реакции фосфатирования, вызванные лекарствами. Кроме того, эта технология может широко использоваться в исследованиях передачи сигналов в клеточной биологии. Чжан Юэ, аспирант Шанхайского института органической химии Китайской академии наук, является первым автором диссертации, а соавторами - исследователями - исследователями - биохимиками Шанхайского института органической химии Китайской академии наук и исследователями - исследователями Хао Пиляном из Шанхайского университета науки и техники. Спасибо Samerfei Technology Ltd за помощь в анализе Astral. Работа финансируется такими проектами и фондами, как Государственный комитет по природным наукам, Китайская академия наук и Шанхайская городская комиссия по науке.